(5) 細胞膜(Cell
Membrane)
一、細胞膜的流體鑲嵌模型(Fluid
Mosaic Model)
|
細胞膜的雙層磷脂(Phospholipids)具有流體性,
蛋白質鑲嵌於磷脂層之間。
細胞膜是非常動態的胞器!
|

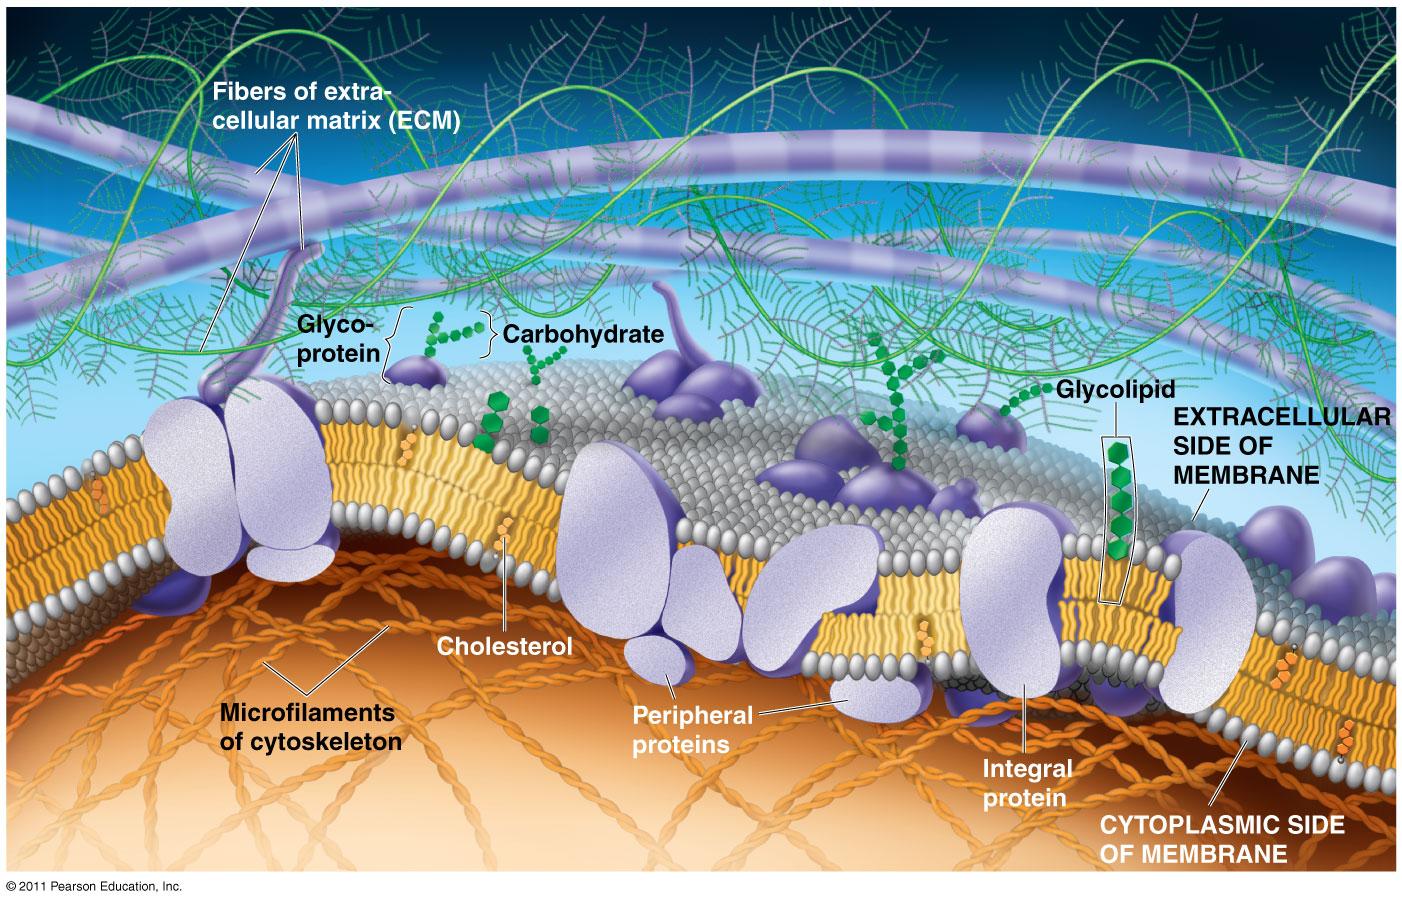
圖01. 1972年2月Singer & Nicolson於美國頂尖的科學期刊《Science》上,
發表了沿用至今的細胞膜模型─流體鑲嵌模型。
細胞膜是由四種巨分子組成:
(1)磷脂(Phospholipids)圓型極性頭部為親水端,兩條脂肪酸為親脂端。
(2)蛋白質(Proteins)兩種:a.整體蛋白(Integral proteins)=整合蛋白
b.週邊蛋白(Peripheral proteins)=外周蛋白=表面蛋白
(3)膽固醇(Cholesterol)─鑲嵌於磷脂層內,外層磷脂層的膽固醇含量較多。
細胞膜的膽固醇含量越高,流體性越低。
(4)糖分子(Carbohydrates)─只存在於外層磷脂層之外,與蛋白質或磷脂結合形成糖磷脂或糖蛋白。
圖片來源:
1.
磷脂(Phospholipids)的特性:
(1)磷脂是由磷酸根(phosphate)形成的頭部+甘油(glycerol)+兩條脂肪酸組成。一條為飽和脂肪酸(Saturated fatty acid),一條為不飽和脂肪酸(Unsaturated
fatty acid),不飽和是指脂肪酸具有碳碳雙鍵(C=C)。

圖02. 磷脂(Phospholipids)的組成。
圖片來源:
(2)磷脂具有雙極性(amphipathy)─磷酸根的頭部親水;脂肪酸的尾部親脂。
(3)磷脂主要有四種:PC、PE、PI、PS
(4)磷脂具流體性(fluidity)─流體性主要由脂肪酸的不飽和度以
及膽固醇的含量決定。
(5)形成障壁(barrier)─脂溶性物質易通透。

圖03. 磷脂的脂肪酸不飽和度越高(碳碳雙鍵,C=C的數目越多),細胞膜的流體性(Fluidity)越好(左圖)。
磷脂脂肪酸的飽和度越高,細胞膜的流體性越差,黏性(Viscosity)越高(右圖)。
2.
糖分子主要有九種,功能決定細胞的抗原性。
例如血型之所以B型,是因為細胞膜最外層的糖膜(Glycocalyx) ,具有若干半乳糖(galactose)=B抗原。
二、支持細胞膜是『流體鑲嵌模型』之實驗
1. 冰凍蝕刻法(Free
Fracture Experiment)→
證實細胞膜蛋白質鑲嵌於雙層磷脂。

圖04. 冰凍細胞(Freeze),再以鋒利的刀片蝕刻(Fracture),切開的細胞膜雙層磷脂層,靠近細胞外液層(Extracellular layer),在掃描式電子顯微鏡(SEM)下觀察,顆粒稀少(右上圖)。靠近細胞質層(Cytoplasmic
layer),在SEM下觀察,顆粒眾多(右下圖)。那是因為切割方式造成的結果。
重點是,雙層磷脂層之間有顆粒(=蛋白質)存在→表示確實有蛋白質鑲嵌於磷脂層。
圖片來源:
2.
人-小鼠細胞融合實驗(Human-Mouse
Cell Fusion Experiment)→證實細胞膜具流體性(Fluidity)。
Frye LD, Edidin M (1970). "The
rapid intermixing of cell surface antigens after formation of mouse-human heterokaryons". J Cell Sci. 7
(2): 319–35. PMID 4098863.

圖05. Frye and Edidin於1970年做的人和小鼠細胞融合實驗
(1)人和小鼠細胞膜上各有特殊的蛋白質。
(2)以仙苔病毒(Sendai virus)將人和小鼠細胞融合成融合細胞(Hybrid cell)。
(3)人和小鼠細胞膜上特殊的蛋白質,分別以紅色以及綠色螢光抗體標定。
(4)於37℃時,五分鐘後細胞膜上的紅綠顏色抗體開始混合。
(5)四十分鐘後細胞膜上的紅綠顏色抗體完全混合。
如果實驗溫度降低,則紅綠顏色抗體完全混合所需的時間會超過40分鐘!
此實驗證實細胞膜之磷脂層具有流體性(Fluidity)。
圖片來源:
3.
光漂白後螢光回復技術(Fluorescence recovery after
photobleaching, FRAP Technique)

圖06. 光漂白後螢光回復技術(FRAP Technique)
細胞膜表面分子標定上綠色螢光染料→雷射光(Laser)照射一小塊細胞膜將綠色螢光染料漂白→一段時間後漂白處又充滿綠色螢光染料。
此實驗也證實細胞膜具有流體性。
圖片來源:
三、細胞膜流體鑲嵌模型之一些補充
1. 脂筏(Lipid Raft)的發現
(1) 為細胞膜上部分『排列整齊而突出』的小區塊。
(2)
含有高比例的神經鞘脂質(sphingolipids)及膽固醇(cholesterol)。
(3)
含有特定的蛋白質(例如GPI-linked protein),功能與訊號傳遞(Signal transduction)有關。

圖07. 脂筏(Lipid Raft)=膜筏(Membrane Raft)
圖片來源:
2.
整體蛋白種類和形狀的演進

圖08. 1972年Singer & Nicolson提出細胞膜流體鑲嵌模型時,所想像整體蛋白(Integral
proteins)的形狀。
圖片來源:

圖09. 現今認為細胞膜上具有的蛋白質種類和形狀。
(a)單側整體蛋白(Integral monotopic protein)
(b)單次穿透蛋白(Singlepass protein)
(c)多次穿透蛋白(Multipass protein),一般為穿透細胞膜七次。
(d)多次單位蛋白(Multisubunit protein)
(e)周邊蛋白(Peripheral protein)
(f)Fatty acid or isoprenyl anchor protein
(g)GPI anchor protein
圖片來源:
四、細胞膜之功能
(1)
障壁功能(Barrier Function):脂溶性物質較易通透
(2)
選擇性通透(Selective Permeability):
(3) 運輸功能(Transport
Function):運輸蛋白、離子通道…
(4) 酵素功能(Enzymatic
activity):GTPase 超級家族
(5) 訊號傳遞功能(Signal transduction):接受器、carriers、
G蛋白…
(6) 細胞間認知功能(Cell-cell
recognition):
主要組織配對複合體(MHC)。
(7) 維持細胞形狀
哺乳類紅血球之所以是雙凹形(biconcave),是紅血球主要的周邊
蛋白血影蛋白(Spectrin)耗能維持。如果血影蛋白基因突變,導
致血影蛋白表現的量下降 →紅血球形狀變球形(spherocyte)。

圖10. 紅血球(RBC)細胞膜內面,維持紅血球為雙凹形之周邊蛋白。
圖片來源:
(8) 附著功能(Attachment)─與細胞骨架(cytoskeleton)以及細
胞外基質(Extracellular
Matrix, ECM)附著

圖11. 細胞膜往內與細胞骨架(cytoskeleton)附著;往外與細胞外基質(Extracellular
Matrix, ECM)附著。
圖片來源:
|
細胞外基質(Extracellular Matrix, ECM)
細胞外基質(ECM)是由細胞分泌到細胞外空間的多種糖蛋白構成,主要有膠原蛋白(collagen)、纖維連接蛋白(fibronectin)、層粘連蛋白(laminin)等。構成結構相當緻密有序的網路。
細胞外基質(ECM)不僅對組織細胞有支持、保護、營養等功能,還參與細胞的識別、遷移等活動。
|

圖12. 細胞膜上整體蛋白之兩個實例:
(a)血型糖蛋白(Glycophorin),131胺基酸組成,穿透細胞膜一次。
(b)細菌視紫紅質(Bacteriorhodopsin),248胺基酸組成,穿透細胞膜七次。
圖片來源: